
b. Les sélectines
Structure biochimique
Les Sélectines appartiennent à une grande famille protéines, les Lectines, qui ont la
particularité de pouvoir se fixer à un groupement carbohydrate.
Les Sélectines sont des glycoprotéines transmembranaires intégrales, qui nécessitent
l’interaction du calcium pour être fonctionnelles et qui ont principalement une fonction
d’adhérence entre deux cellules.
Ce sont des protéines qui sont intrinsèques et qui sont insérer dans la membrane après
signalisation.
Sur le plan de la structure, on va prendre comme modèle de description la P-Sélectine, situé
sur les plaquettes
Les Sélectines appartiennent à une grande famille de protéines, les Lectines, qui ont la particularité de pouvoir se fixer à un groupement carbohydrate. Les Sélectines sont des glycoprotéines transmembranaires intégrales, qui nécessitent l’interaction du calcium pour être fonctionnelles et qui ont principalement une fonction d’adhérence entre deux cellules. Ce sont des protéines qui sont intrinsèques et qui sont insérer dans la membrane après signalisation (d’expression provoquée), exprimées par les cellules impliquées dans l’inflammation :
ü Plaquettes
ü Endothélium
ü Leucocytes
La partie extracellulaire comportant 3 domaines :
Ø Domaine lectine C-like (120AA) impliqué dans l’interaction (site de fixation du Ca++)
Ø Domaine EGF-like (33 AA) d’homologie avec le facteur de croissance
Ø Domaine Structural : des séquences consensus répétées SCR d’environ 62AA proche de la membrane de longueur variable :
- P sélectine : comporte 9 SCR
- E sélectinee : comporte 6 SCR
- L sélectine : comporte 2 SCR
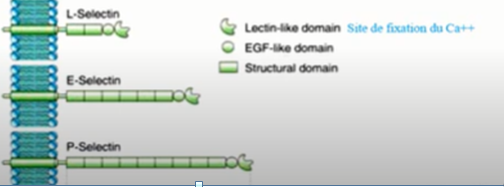
Figure 5. Structure chimique des sélectines
Tableau : Principales caractéristiques de sélectines
Interactions moléculaires :
Ø L’interaction s’effectue avec un motif glucidique de type de mucine exprimé par d’autre cellules (glycolipide ex : Sialyl lewis ou glycoprotéine)
Ø L’intéraction est : transitoires, brèves, hautement spécifiques, hétérotyppiques, hétérophiles et Ca++ dépendantes
Fonction :
Un signal inflammatoire stimule les cellules endothéliales de la paroi du vaisseau sanguin qui expriment à leur surface membranaire des molécules de sélectine. Les leucocytes possèdent à leur surface des antigènes (glucides sous forme de glycoprotéine ou glycolipide) spécifique des molécules de sélectine (portées par les c.endothéliales du VS). La formation du complexe sélectine-glucide ralentit le flux circulatoire des leucocytes et leur permet de quitter le sang et de se diriger vers le site inflammatoire
En terme de fonction, les Sélectines établissement des interactions hétérophiles, brèves et
sélectives, et c’est par cette fonction que ces Sélectines ont un rôle essentiel dans l’interaction
entre les Leucocytes et les cellules endothéliales permettant le Rolling, phénomène
d’acheminement des Leucocytes à travers la paroi du vaisseau vers un foyer inflammatoire.
c. Les intégrines.
Les intégrines sont le récepteur de la Matrice extra-cellulaire. Ce sont également des glycoprotéines transmembranaires constituées d’un hétérodimère avec une chaine α et une chaine β. La chaine α est caractérisée dans son domaine extracellulaire par un pont disulfure et c’est cette chaine essentiellement qui permettra de fixer le Ca2+. La chaine β est caractérisée par une richesse en cystéine dans son domaine extracellulaire. C’est le domaine intracellulaire de la chaine β qui permettra le lien au cytosquelette via d’intermédiaire de protéines d’ancrage. On distingue à l’heure actuelle 24 isoforme de la chaine α, 9 de la chaine β, mais toutes les combinaisons ne sont pas possibles.
Ø Au niveau des leucocytes ils sont exprimés de manière constitutive sous la forme inactive.
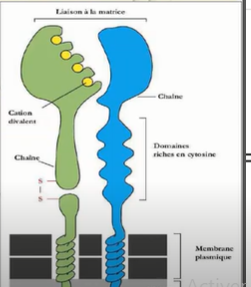
Figure 6. Structure chimique des intégrines.
Variétés:
Ø Cellules épithéliales
Ø Plaquette
Ø Leucocytes
Le ligand étant essentiellement une molécule de la Matrice Extra-Cellulaire (ex : collagène). Un même ligant, par exemple les laminines, peuvent s’associé à plusieurs types d’intégrines. En termes d’interaction, dans le domaine extracellulaire, les intégrines vont pouvoir reconnaitre la Fibronectine, ainsi que les Laminines et le Collagène. Le domaine intracellulaire est capable d’établir deux types de relations :
- Interaction avec les Microfilaments d’Actines, grâce à des molécules intermédiaires, l’α-Actinine, la Taline ou la Vinculine.
- Interaction avec des protéines enzymatiques ayant une fonction de kinase.
Fonction:
Ø La migration et l’adhérence : au cours de l’embryogenèse, réponse immunitaire, cicatrisation, coagulation
Ø Forme et polarité
Ø Survie
Ø Multiplication et différenciation (nécessite des signaux captés par les intégrines)
d. La superfamille des immunoglobulines
Structure chimique : Ce sont des glycoprotéines membranaires indépendantes de Ca++ qui présentent une organisation en domaines Ig like. Un domaine est une séquence d’environ 100 AA riche en cystéines stabilisés par un pont disulfure.
Variété
Ø NCAM : neurones / cellule musculaire
Ø Ng CAM : cellule gliale
Ø ICAM et VCAM : endothélium vasculaire
• ICAM 1 : leur expression augmente fortement dans les conditions inflammatoires sous l’effet de IL2 et TNFα.
• ICAM 2 : est d’expression constitutive sur les cellules endothéliales et intervenir dans la diapédèse des leucocytes.
• ICAM 3 : est exprimé sur les cellules présentatrice de l’antigène et sont absents sur les cellules endothéliales, elle intervient dans les interactions cellulaires immunes.
Ø VCAM : absente dans les cellules endothéliales au repos, son expression augmente sous l’action de la TNFα
Ø PECAM 1 (ou CD31) : elle est exprimée sur les plaquettes, cellules endothéliales et les leucocytes
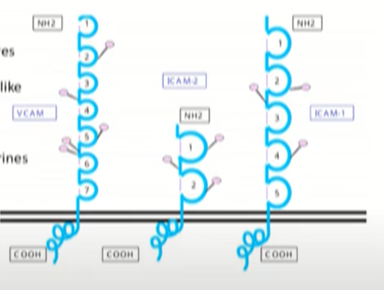
Figure 7 : Structure chimique de quelques superfamilles des l’immunoglobulines
Interaction indépendante de Ca2+:
Ø Permanente : Homotypiques _ Homophiles. Ex : Neurone – Neurone
Ø Permanente : Homotypiques _ Hétérophiles. Ex : Neurone – Cellule gliale
Ø Permanente : Hétérotypiques _ Homophiles. Ex : Neurone – muscle
Ø Transitoire : Hétérotypiques _ Hétérophiles. Ex : Leucocyte – C. endothéliales
Fonction :
Ø L’adhésion au cours de la neurogenèse (neurone –muscle, neurone – c gliale)
Ø L’adhésion transitoire des leucocytes au cours de la diapédèse
2.3 Système des jonctions communicantes (ou jonction gap)
Il permet le passage passif de molécules de faible poids moléculaire du cytoplasme d’une cellule à celui de sa voisine.
Localisation : faces latérales de toutes cellules
Morphologie : plaques denses cytoplasmiques ; membranes plasmiques adjacentes presque accolées (espace de 2 à 3 nm) ; canal de 2nm de diamètre
Rôle : permet le passage de petites molécules ex : AMPc, ions, vitamines, etc..
Structure chimique : c’est un complexe moléculaire de structure tubulaire : connexon formé de 6 protéines (connexines), deux connexons se juxtaposent pour former un canal complet. Le calcium à forte concentration entraîne la fermeture du canal.
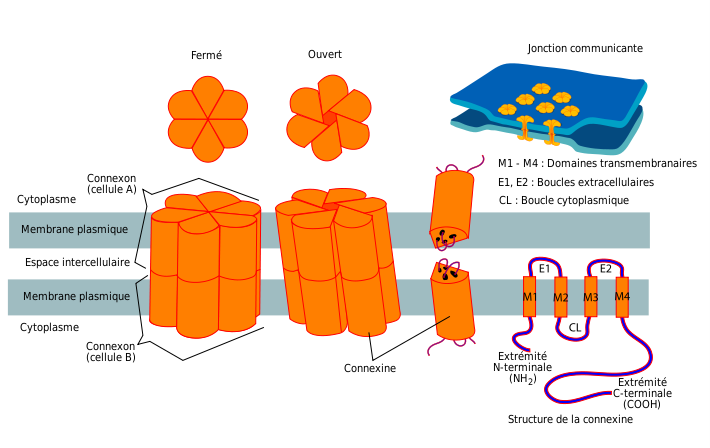
Figure 8 : Les jonctions communicantes (jonctions gap)