
Généralité :
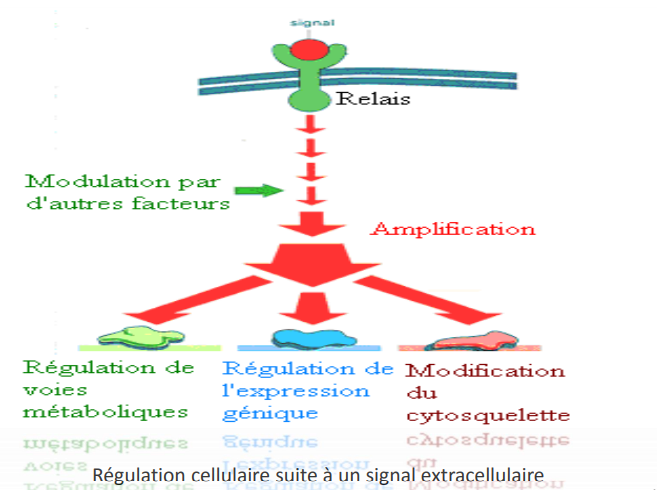
L’effet physiologique possible d’une signalisation par les récepteurs membranaires :
1- Une molécule de signalisation extracellulaire se lie à un récepteur et l’active
2- Activation du récepteur et des protéines associées qui vont pouvoir :
- activer des protéines kinases
- activer des enzymes d’amplification créant des seconds messagers intracellulaires ;
3- Les seconds messagers vont ensuite :
· Modifier l’ouverture et la fermeture des canaux ioniques en créant des signaux électriques et modifiant le potentiel de membrane de la cellule
· Augmenter le calcium intracellulaire
· Changer l’activité enzymatique des protéines kinases ou phosphatases ;
4- Les protéines modifiées par la liaison du calcium et par phosphorylation contrôlent séparément ou en même temps ;
· Des enzymes métaboliques
· Des protéines motrices pour la contraction musculaire et le mouvement du cytosquelette
· Des protéines impliquées dans l’activité des gènes et synthèse protéiques
· Des transports membranaires et des récepteurs protéiques
|
Figure 1. Régulation cellulaire suite à un signal extracellulaire |
1. Les récepteurs
Les récepteurs couplés aux protéines G sont des récepteurs à 7 domaines transmembranaires. Lorsqu’ils sont activés, ils subissent une modification de conformation et activent les protéines G. Les protéines G sont composées de trois sous-unités protéiques (α, β‚ et γ). Lorsque le récepteur est activé, la sous-unité α libère son GDP pour se lier au GTP. Cette liaison avec le GTP provoque la dissociation des trois sous-unités en deux composants actifs (la sous-unité α et un complexe βγ) qui vont stimuler soit des enzymes soit des canaux ioniques de la membrane plasmique. La sous unité α possède une activité GTPasique. Lorsqu’elle hydrolyse son GTP en GDP, elle se réassocie à un complexe βγ pour réformer un trimère inactif. Les récepteurs couplés aux protéines G activent de nombreuses voies intracellulaires.
2. Protéines G :
Les protéines G sont attachées à la face cytoplasmique de la membrane plasmique. Elles servent de relais entre le récepteur activé et l'effecteur. Les protéines G se présentent toutes comme des hétérotrimères comportant 3 sous-unités : a, b et g. Il y a de nombreuses protéines G ; on les distingue essentiellement par la nature de leurs sous-unités a. On distingue divers types de protéine G: Gs, Gi/o, Gq/11 et G12/13.
Tableau 1 : Divers classes de protéines G
|
Classe de protéine G |
Effecteurs associés |
|
Gs |
Stimule l’adenyl cylase |
|
Gi |
Inhibe l’adenyl cyclase Ouverture du canaux K+ |
|
Go |
Stimule la PLC-β Ouverture du canaux K+ |
|
Golf |
Stimule l’adenyl cyclase dans les neurones sensoriels olfactifs |
|
Gq/11 |
Stimule la PLC-β |
|
G12/13 |
Stimule Rho-GEF pour réguler l’actine de cytosquelette |
|
Gt |
Stimule GMPc dans les batonnets photorecepteurs |
3) La voie de l’adenylate cyclase (AC)
La liaison du signal extracellulaire au récepteur couplé aux protéines Gαs active celles-ci. L’activation de la protéine G stimule l’adénylate cyclase qui produit une augmentation de l’AMP (adénosine monophosphate) cyclique induisant l’activation de la protéine-kinase A (PKA).
L’effet principal de l’AMPc est l’activation de la PKA (Protéine Kinase AMPc-dépendante). Cette PKA peut alors phosphoryler de nombreux substrats, ce qui amplifie considérablement les effets des signaux extracellulaires.
Exemples :
ü Dans les adipocytes : une PKA (activée par l’AMPc) stimule la production d’acide gras.
ü Dans les cellules ovariennes : une PKA (activée par l’AMPc) induit une augmentation de la synthèse des œstrogènes.
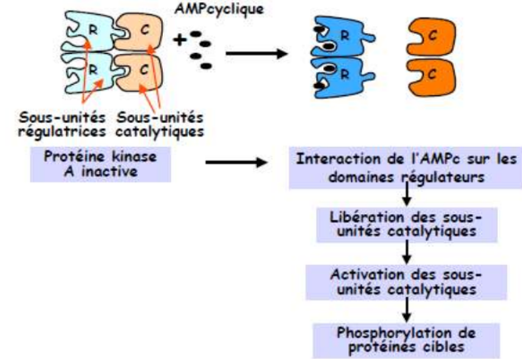
Figure 2 : Activation de la protéine kinase A (PKA) par l’AMPc
Les gènes cibles de la PKA contiennent, au niveau de leur région régulatrice, une séquence d'ADN appelée CRE (Cyclic AMP Response Element). Dans ce cas, les sous-unités catalytiques C de la PKA activée, entrent dans le noyau où elles phosphorylent un facteur de transcription appelé CREB (CRE-Binding protein). Le CREB phosphorylé reconnaît et se fixe sur la séquence CRE, puis recrute un coactivateur de transcription CBP (CREB-Binding Protein) ; ce qui permet de moduler la transcription de ces gènes.
|
|
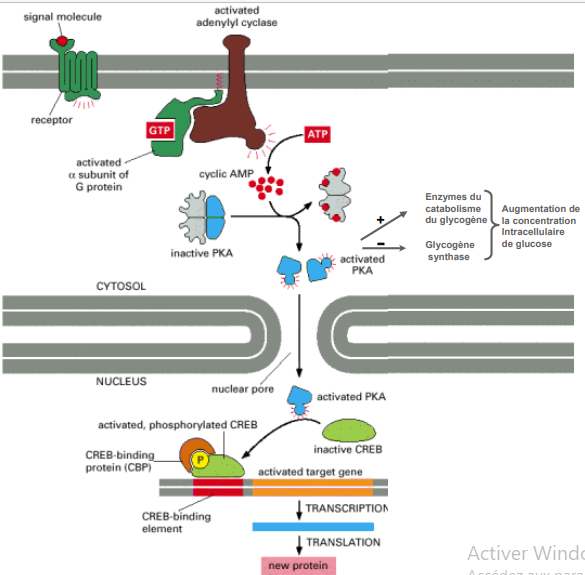
Figure 3: Rôle de la PKA dans la transcription des gènes
3) La voie de la phospholypase C (PLC)
La PLC est une enzyme cytosolique située à proximité de la membrane plasmique. Lorsque la PLC est activée par la s-u αq, elle hydrolyse le PIP2 (PhosphatidylInositol 4, 5-bisphosphate). L’hydrolyse produit de l’IP3 (Inositol triphosphate) qui une molécule soluble, et du DAG (diacylglycérol) qui reste dans la membrane.
Ø L’IP3 se fixer sur son récepteur situé sur la membrane du REL. Ce récepteur est un canal Ca2+ qui s’ouvre et permet la libération de Ca2+ dans le cytoplasme.
Ø Les ions Ca2+ se fixent et activent la calmoduline. Celle-ci devient alors capable d’activer de nombreuses enzymes dont des protéines kinases Ca2+/calmoduline dépendantes (CaM Kinase).
Ø Le DAG active une PKC (Protéine Kinase Calcium-dépendante). Elle phosphoryle de nombreux substrats qui relaient le message, en particulier des facteurs de transcription.
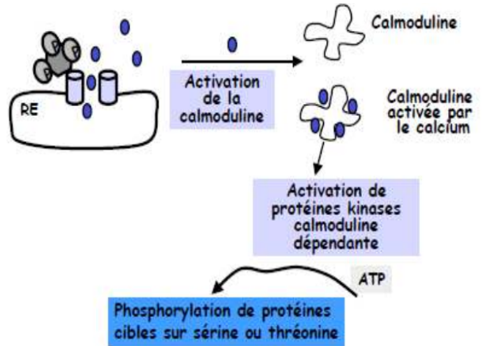
Figure 4 : Activation de la calmoduline dépendante de calcium
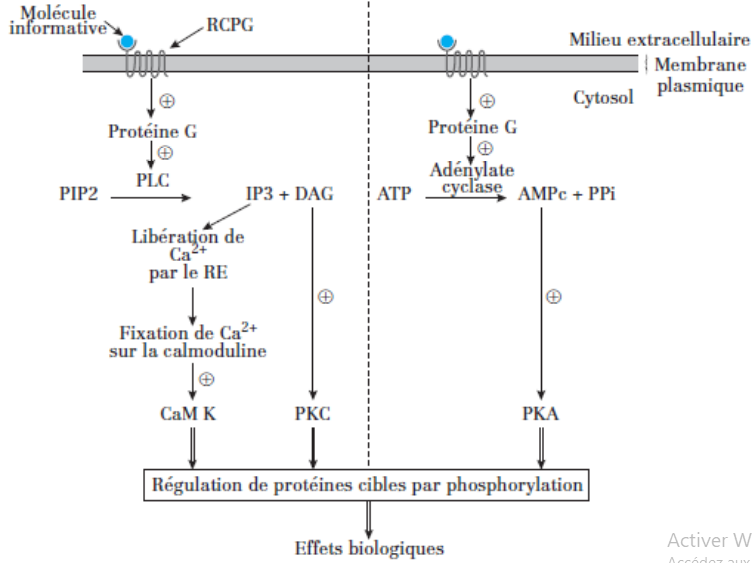
Figure 5. Activation de la voie de la phospholipase C (PLC) et l’adenylate cyclase de récepteurs couplés aux protéines G.
4) Les mécanismes d’inactivation de récepteur couplé à la protéine G
On remarque que la réponse cellulaire à de nombreux transmetteurs (hormones) diminue rapidement malgré le maintien des stimulations ce phénomène est appelé la désensibilisation c.-à-d. le récepteur n’est plus sensible à son messager.
Le but de ce phénomène est de : limiter dans le temps le signal et éviter une surcharge de stimulation et ses effets toxiques potentiel, par exemple s’il y’a une concentration élevée des catécholamines, le récepteur va se désensibiliser pour arrêter la chaîne de transduction du signal. Cet arrêt du signal résulte de la mise en place de mécanismes régulateurs qui agissent à différents niveaux de la cascade de signalisation.
4.1 Suppression de l'agoniste du milieu extracellulaire
La première étape de l’inactivation concerne le ligand. Il y a d’abord le rétrocontrôle négatif observé pour certains ligands comme les hormones ; c’est un message qui permet d’arrêter leur sécrétion.
Deux autres mécanismes entraînent une diminution de la concentration de l'agoniste du milieu extracellulaire : il s'agit de la recapture et de la dégradation extracellulaire de l'agoniste par des enzymes (exemple : acétylcholine et acétylcholinestérase)
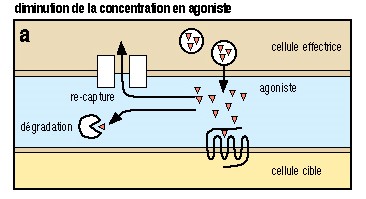
Figure 6 : Régulation de l’agoniste (Up regulation)
4.2. Le découplage fonctionnel par phosphorylation
L'activation d'un RCPG active les protéines G intracellulaires. Ce couplage est peu à peu inhibé, car on assiste à une phosphorylation de la région intracellulaire du récepteur qui est responsable de l'activation des protéines G. Les enzymes responsables de cette phosphorylation sont des GRK (G-protein coupled Receptor Kinases). Le récepteur phosphorylé est reconnu par des protéines de type arrestine qui se lient au récepteur et le rendent incapable de faire le couplage avec la protéine G. Celle-ci devient donc incapable d'effectuer l'échange GDP/GTP.
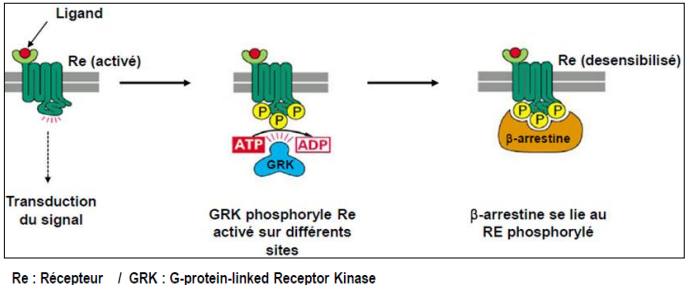
Figure 7 : La désensibilisation du récepteur RCPG par phosphorylation.
4. 3. L'internalisation du complexe ligand-récepteur
Les mécanismes de phosphorylation des RCPG et de liaison de l'arrestine sont suivis par une internalisation du complexe ligand-récepteur phosphorylé, à l'intérieur de vésicules recouvertes de clathrine. Les récepteurs ainsi endocytés peuvent alors :
▪ Soit subir un recyclage à la membrane plasmique (ce qui nécessite une déphosphorylation du récepteur et une élimination du ligand),
▪ Soit subir une dégradation, suite à la fusion des vésicules d'endocytose avec les lysosomes.
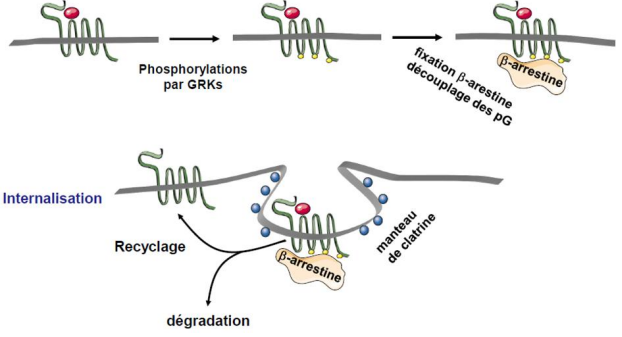
Figure 8 : Séquestration du récepteur
4.1.2. La régulation négative : Down-régulation
Lors d'une exposition longue à un ligand agoniste (plus d’une heure), on peut observer une diminution du nombre total de récepteurs à la surface cellulaire. Deux phénomènes sont impliqués dans cette down régulation : une diminution de la synthèse de récepteurs et une augmentation de sa dégradation.
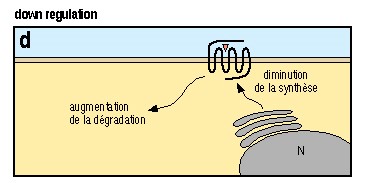
Figure 9 : Régulation négative ou Down régulation