
Chapitre 4 : Les mécanismes de signalisation intracellulaire via les récepteurs enzymatiques.
Récepteurs à activité enzymatique
Il existe plusieurs classes de récepteurs enzymatiques :
1. Récepteur à Tyrosine kinase
2. Les récepteurs couplés à des tyrosines kinases (RCTK)
3. Récepteur à Sérine/Threonine kinase
4. Récepteur couplé à une kinase cytosolique
1. Récepteur à Tyrosine kinase (RTK)
Les récepteurs à activité tyrosine-kinase sont les plus nombreux, regroupés en 20 sous-familles. Ils ont de multiples ligands dont divers facteurs de croissance et hormones comme les facteurs de croissance des fibroblastes (FGF), des cellules endothéliales (VEGF), des facteurs de croissance dérivés des plaquettes (PDGF), des cellules épithéliales (EGF), l’insuline ou encore les facteurs de croissance de type insuline-like (IGF-1 et IGF-2). La liaison du ligand à son récepteur à activité tyrosine-kinase déclenche une autophosphorylation du récepteur sur de multiples tyrosines. Cette autophosphorylation active des kinases et recrute de nombreuses protéines de signalisation intracellulaire qui s’interagissent par des domaines spécifiques et hautement conservés (domaines SH2 ou régions d’homologie avec Src) pour transmettre le signal par de multiples voies de signalisation.
1.1 Caractéristiques des récepteurs tyrosine kinase (RTK)
- Ils possèdent un seul domaine transmembranaire ; un domaine extracellulaire N-terminal glycosylé qui fixe le ligand et Le domaine intracellulaire avec 2 régions : région régulatrice (site d’autophosphorylation) et région catalytique qui porte l’activation kinase
- Ils sont responsables à eux seuls du mécanisme de transduction
- Possèdent 2 niveaux d’activation :
Réponse cytosolique avec effets métaboliques
Réponse nucléaire (activité mitotique de croissance cellulaire)
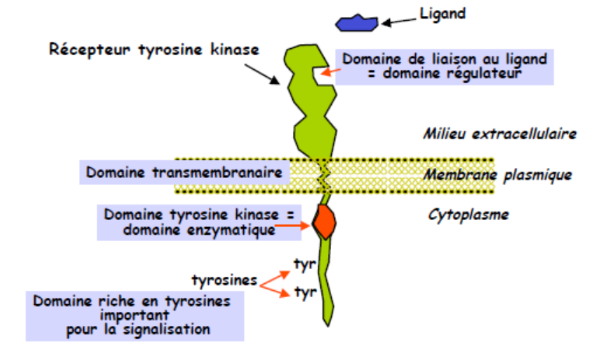
Figure 1. Le récepteur à activité tyrosine kinase.
1.2 Mécanisme d’action des récepteurs tyrosine kinase (RTK)
Ø Fixation du ligand sur le domaine extracellulaire du récepteur
Ø Transconformation du domaine extracellulaire du R qui se rapproche d’un récepteur voisin
Ø Dimérisation des récepteurs, cette dimérisation provoque l’interaction des domaines cytosoliques du récepteur
Ø Déclenchement d’une autophosphorylation dans la région régulatrice et activation de l’activité tyrosine kinase
Ø Recrutement de protéines cytosoliques spécifiques dans des sites de phosphorylation et de l’activité enzymatique
Ø Ces protéines portent des motifs structuraux particuliers (qui permettent la reconnaissance et l’interaction), ce sont des domaines :
- SH (soit SH2 soit SH3) permettent l’interaction avec des phosphotyrosine d’autres protéines
- PTB (Phospho Tyrosine Binding) qui va se lier aux tyrosines phosphorylées
- PH s’associent à des lipides membranaires et permettent l’incorporation de protéines particulières dans la membrane
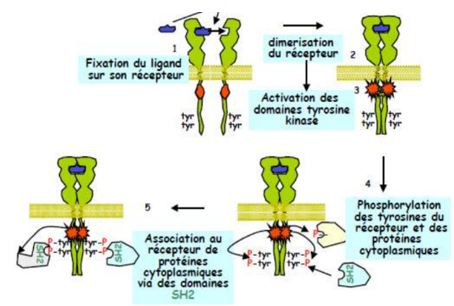
Figure 2. Activation du récepteur à activité tyrosine kinase
Ø Lorsque ces protéines sont phosphorylées, il y’aura des modifications dans la cellule, qui engage l’activation de 3 voies qui sont :
- Voies des MAP kinase (mitogen-activated protein kinases)
- Voie de phosphatidyl inositol 3 kinase (PI3K)
- Voies de PLC8 (identique à la PLCβ avec sortie du Ca++)
a) Voie de MAP Kinase : (activité mitogène)
Les MAP Kinases (Mitogen Activated Protein kinase) C'est la voie de signalisation la plus fréquente activée par les récepteurs de type RTK et qui permet la transduction des signaux de prolifération et de différenciation.
· La protéine cytosolique spécifique la plus importante de cette voie est la Grb2 (Growth Factor Receptor Bindding 2)
· La Grb2 est une protéine adaptatrice possède un domaine SH2 qui lui permet d’interagir avec les phospho-tyrosines du récepteur.
· Elle possède également un domaine SH3 qui lui permet d’interagir avec une autre protéine cytosolique spécifique appelée SOS (son of sevenless), cette interaction permet à la protéine SOS d’activer son rôle de GEF (guanine nucleotide exchange factor)
· SOS exerce son action GEF (un facteur d’échange des nucléotides guanyliques) sur la protéine RAS qui devient active.
· La RAS inactive fixe le GDP
· La RAS s’active après interaction avec SOS ˃˃ elle fixe le GTP
· La RAS est le composant intracellulaire qui va déclencher la voie des MAPKinase ou ERK
· La RAS est appelée petite proteine G (par analogie à la s/u alpha des prot G)
La voie des MAPK est organisée en 3 niveaux de phosphorylation :
1- RAS activé ˃˃ phosphoryle la RAF, Pendant ce temps, RAS hydrolyse son GTP et passe à l'état inactif Ras-GDP qui se dissocie de RAF.
2- RAF activé ˃˃ phosphoryle la MAK (Mitogène Activating kinase) appelée aussi MEK (Mitogène Extra-nucleaire kinase)
3- La MAK phosphoryle la MAPK (Mitogène Activation Protéine Kinase)
La MAPK activé pénètre dans le noyau et aura 2 fonctions :
1- Activer la transcription d’un facteur de transcription : Cfos qui va provoquer la transcription de gènes intervenant dans le cycle cellulaire.
2- Phosphoryler 2 facteurs de transcription : TCF et SRF, qui vont activer la transcription des gènes des protéines impliquées dans la prolifération cellulaire.
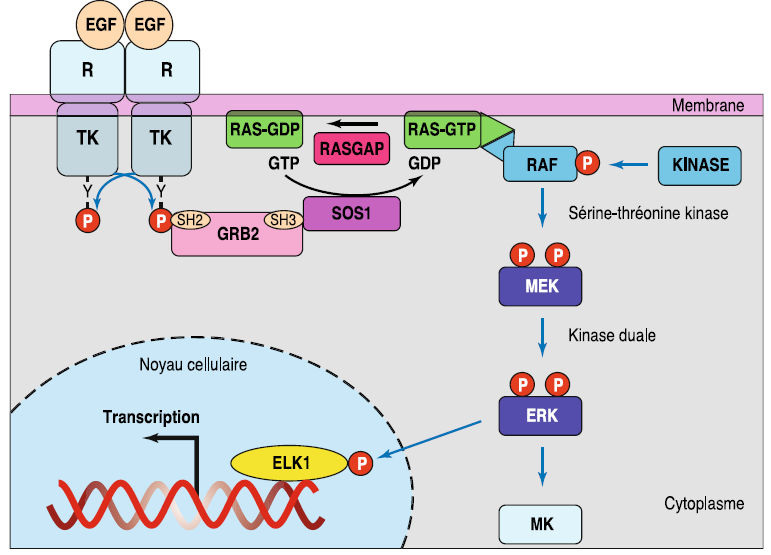
Figure 3. L’activation de la voie de la MAP Kinase.
- La RAS possède une activité GTPasique qui lui permet de passer de la forme active vers l’inactive.
- Les mutations oncogéniques de RAS sont présentes dans sa région GTPasique (activation permanente même en absence de ligand)
b) La voie de PI3 kinase (PhosphoInositides 3 Kinase)
Peut être activée par les récepteurs à activité tyrosine kinase mais aussi par d’autres types de récepteurs comme les récepteurs couplés aux protéines G. Elle est impliquée dans la croissance et la prolifération cellulaires.
· La PI3-K est une kinase qui phosphoryle des phosphoinositides au niveau de l'hydroxyle du carbone 3 de leur inositol. Elle est constituée de deux sous-unités :
· Une sous-unité régulatrice p85 contenant deux domaines SH2, et une sous-unité catalytique p110 à activité kinasique.
· Quand un récepteur RTK est activé en présence d'un ligand, la PI3-K s’ancre au niveau des tyrosines phosphorylées du récepteur par sa sous-unité p85 lui permettant de s’approcher de la membrane plasmique. La sous-unité p110 transforme alors le PIP2 membranaire en PIP3 (phosphatidyl inositol triphosphate). Grâce à sa structure, le PIP3 sert de site d'ancrage à des protéines ayant des domaines de liaison de type PH (Pleckstrin Homology).
· Deux enzymes intervenant dans la voie de signalisation PI3-K possèdent un domaine PH. Elles se lient alors au PIP3 qui les recrute vers la membrane plasmique tout en les rapprochant l'une de l'autre. Il s'agit de la PDK (Phosphoinositide-Dependent Kinase) et de la protéine kinase B (PKB, appelée également Akt) qui sont des serine/thréonine kinases.
· La PDK phosphoryle alors la PKB (Akt) qui, ainsi activée, se détache du PIP3 pour aller phosphoryler à son tour ses protéines cibles et moduler leurs activités.
Généralement, cette voie favorise la survie cellulaire en inhibant des protéines pro-apoptotiques et/ou la transcription des gènes qui les codent.
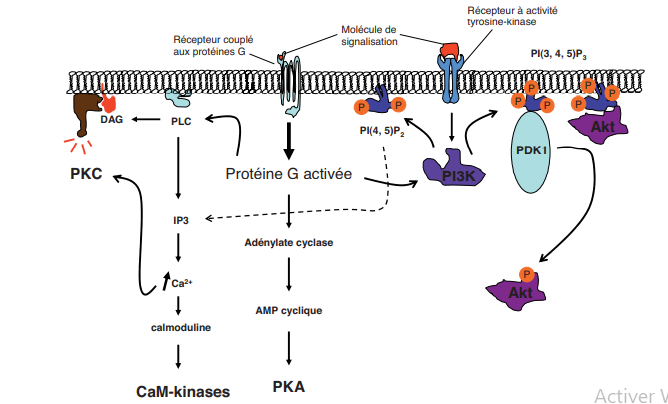
Figure 4. L’activation de la voie de PI3 kinase (PhosphoInositides 3 Kinase)
2. Les récepteurs couplés à des tyrosines kinases (RCTK)
Les RCTK interviennent dans la transmission des messages de l'hormone de croissance, de la prolactine, de l’érythropoïétine mais aussi des interférons et différentes interleukines. Ils régulent l’expression de gènes impliqués dans l’activation, la prolifération et la différenciation cellulaires. Ces récepteurs sont constitués de chaînes polypeptidiques n'ayant qu'un seul segment transmembranaire.
2.1 Mécanisme d’action des récepteurs couplé à des tyrosines kinases (RCTK)
· Les RCTK exercent leurs effets par l'intermédiaire de protéines cytoplasmiques qui peuvent s’y associer et qui possèdent une activité tyrosine kinase.
· Leur activation par fixation du ligand induit en général une dimérisation qui permet la liaison et l’activation de tyrosine kinases associées.
· Ces dernières sont nombreuses et varient avec le récepteur considéré. Les plus connues sont celles de la famille JAK (JAK1, 2 et 3 ou encore TyK2).
· La liaison du ligand au récepteur permet de rapprocher suffisamment les tyrosine kinases associées de manière à ce que l'une phosphoryle l'autre (phosphorylation croisée) augmentant ainsi leur activité kinasique.
· Elles phosphorylent alors des tyrosines sur les récepteurs, créant ainsi des sites d'ancrage pour d'autres molécules de signalisation.
· La plupart de ces molécules sont des facteurs de transcription appelés STATs (Signal Transducer and Activator of Transcription).
· C'est une des voies les plus directes pour moduler la transcription de gènes.
a) La voie JAK/STAT
Tous les STATs possèdent des domaines de liaison SH2 qui leur permettent de s'ancrer au niveau des phosphotyrosines spécifiques de certains RCTK activés. Ceci permet de les rapprocher des tyrosine kinases pour être phosphorylés à leur tour et deviennent donc activés.
ü C’est une voie activée par de nombreuses cytokines telles que l’interféron, l’IL-6, IL-15 et de facteurs de croissance comme l’hormone de croissance et le GM-CSF (granulocyte macrophage colony stimulating factor).
ü Les JAK (Jak1, Jak2, Jak3 et Tyk2) sont des tyrosine-kinases intra cytoplasmiques. L’activation des JAK stimule la phosphorylation des protéines STAT.
ü Les STATs activés vont former des dimères qui se déplacent vers l'intérieur du noyau pour intervenir, avec d'autres cofacteurs, dans la régulation de l’expression de gènes spécifiques et donc de la synthèse de protéines déterminant leurs effets physiologiques.
ü JAK stimule aussi les voies de Ras/MAPK et de PI3K et Akt
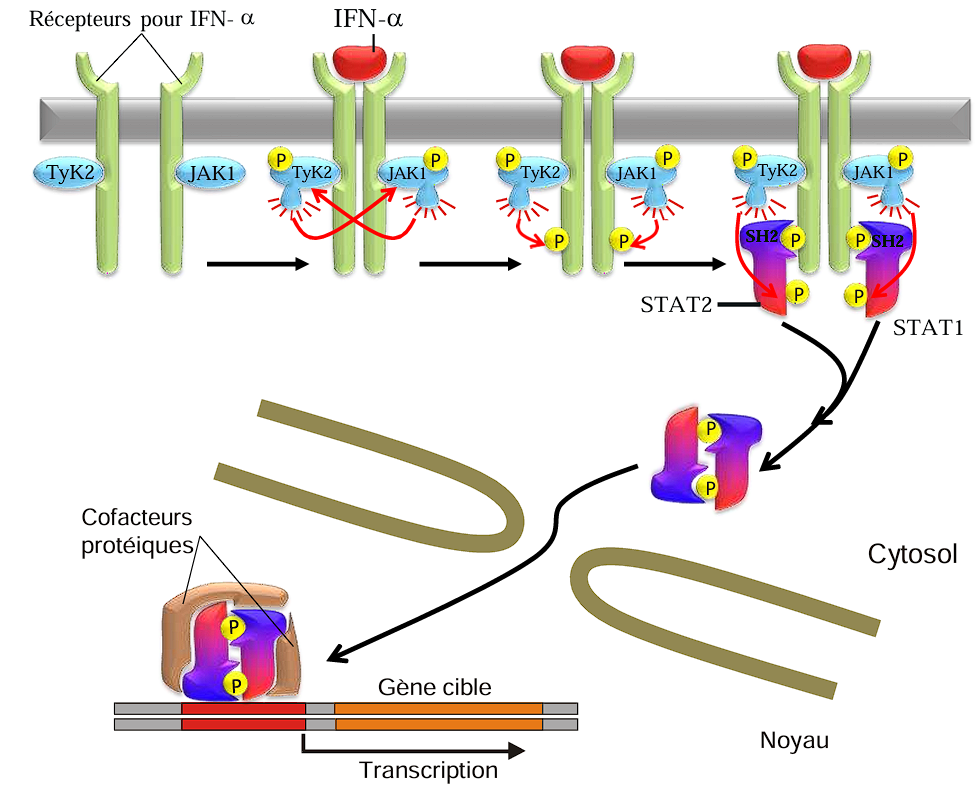
Figure 5. L’activation de la voie de JAK/STAT
b) Le rétrocontrôle négatif de la voie JAK/STAT
La voie des STAT est souvent accompagnée d’un rétrocontrôle négatif :
- STAT stimule la production de protéines inhibitrices telle que SOCS 3 (suppressor of cytokine signalling 3) qui va inactiver JAK et STAT5 qui par rétrocontrôle inactive la STAT phosphorylée. Les JAK sont aussi inhibés par la tyrosine-phosphatase SHP-1
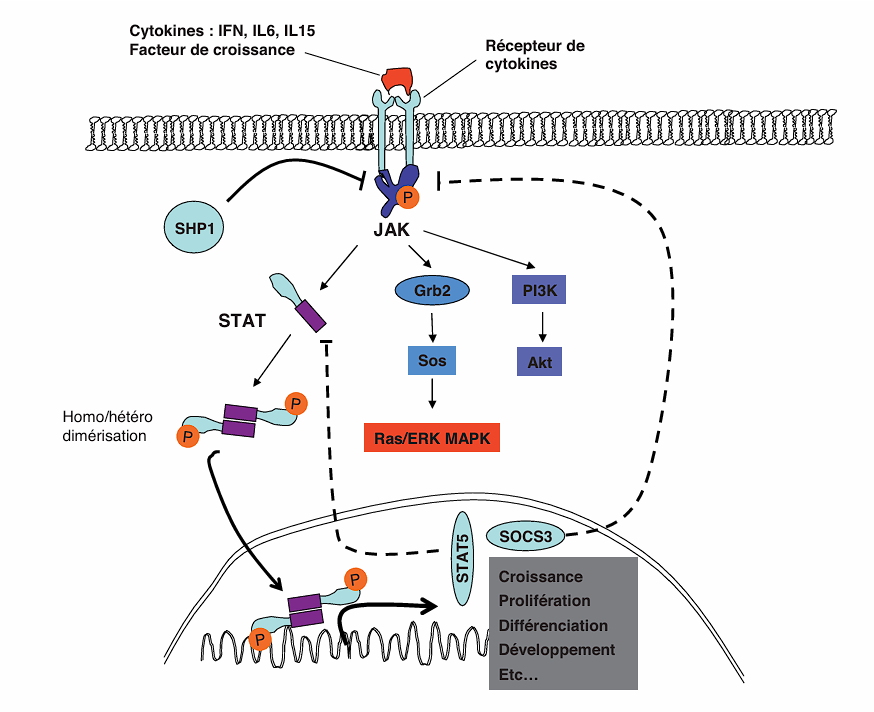
Figure 6. Le rétrocontrôle négatif de la voie JAK/STAT
3. Récepteur à activité Sérine / Thréonine Kinase-RST
Les récepteurs à activité sérine/thréonine kinase reconnaissent et fixent des ligands de trois familles de facteurs de croissance :
ü Les TGFs (Transforming Growth Factors),
ü Les activines
ü Les protéines de morphogenèse osseuse (BMP= pour Bone Morphogenetic Proteins).
Ces facteurs interviennent surtout dans le développement embryonnaire et la différenciation cellulaire.
Le mécanisme d'activation de ces récepteurs fait intervenir deux types de récepteurs dimérisés différents.
Le ligand se fixe d'abord sur un récepteur de type II (RII) qui se lie alors à un récepteur de type I (RI) formant ainsi un hétérotétramère.
L'activité kinasique de RI est induite par phosphorylation de certains de ses résidus sérine par RII. Cette activation est responsable de la phosphorylation de constituants cytoplasmiques mobiles appelés Smad qui agissent directement sur l’expression génique. Il existe trois types de Smad :
1- Les R-Smad (regulated Smad) qui sont phosphorylés et activés par le récepteur activé (RI). Ils comprennent :
Ø Les Smad 2 et 3 qui interviennent dans le cas où les ligands sont des TGFs ou des activines,
Ø Les Smad 1, 5 et 8 pour les ligands BMP (protéines de morphogenèse osseuse).
2- Les Co-Smad représentés par Smad 4.
3- Les I-Smad (Smad 6 et 7) qui jouent le rôle d'inhibiteurs ou antagonistes pour les R-Smad.
Quand les R-Smad sont phosphorylés, ils forment un complexe hétérotrimérique avec Smad 4. Ce complexe pénètre dans le noyau et, en s’associant avec d’autres facteurs, module la transcription de différents gènes cibles.
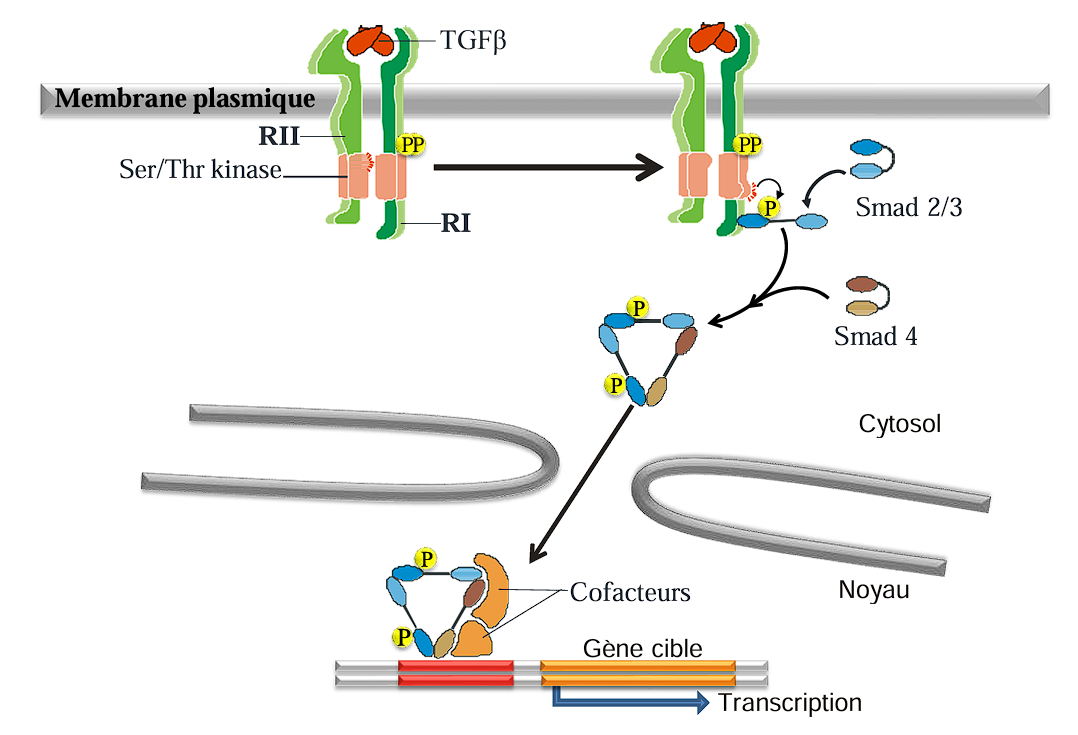
Figure 7. Activation du récepteur à activité Sérine / Thréonine Kinase-RST
·
Le rétrocontrôle négatif du RST
Parmi les protéines induites par certains ligands comme le TGFβ par ex, on trouve des I- Smad, en particulier Smad 7 qui bloque la phosphorylation des R-Smad par les RI.
4. Récepteur à activité Guanylyl Cyclase – RGC
· On trouve ces récepteurs au niveau des muscles lisses des parois vasculaires, de l’intestin et des épithéliaux olfactif et visuel.
· Ces récepteurs sont des homodimères qui possèdent un domaine cytoplasmique à activité guanylyl-cyclase qui transforme le GTP en GMPc.
· Le récepteur activé produira donc du GMPc qui agit comme second messager sur ses systèmes-cibles (canaux, kinases, …).
· Le ligand majeur de ces récepteurs est l’ANF (facteur natriurétique auriculaire), libéré au niveau des oreillettes cardiaques suite à une augmentation du volume sanguin par exemple.
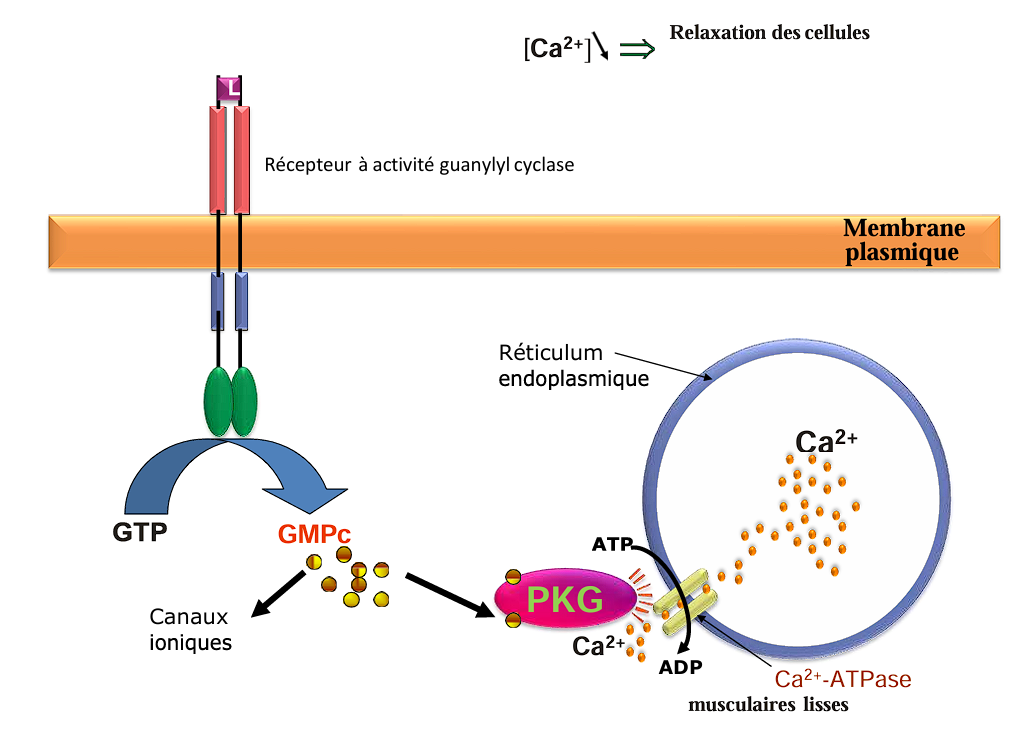
Figure 8. Activation du récepteur à activité Guanylyl Cyclase – RGC
Les peptides natriurétiques, à savoir ANP, BNP et CNP, sont Synthétisés et stockés dans l’auricule cardiaque droit, ils sont sécrétés par les cardiomyocytes en réponse à un étirement de la paroi cardiaque
Leur libération a pour conséquence une baisse de la tension artérielle provoquée par l’augmentation de la diurèse, de la natriurèse et une vasodilatation
a) Voie de signalisation de l’ANF :
ü L’ANF va agir au niveau de récepteurs guanylyl-cyclase se trouvant sur la membrane des cellules musculaires lisses des parois vasculaires.
ü Ces récepteurs activent, via le GMPc, une protéine kinase PKG.
ü Celle-ci activerait la pompe Ca2+-ATPase du réticulum endoplasmique, induisant ainsi une diminution du Ca2+ cytoplasmique.
ü Ceci aboutit à l’inhibition du complexe actine–myosine et par conséquent, il y a relâchement des cellules musculaires lisses et donc une vasodilatation
b) Voie de signalisation du NO :
Le NO va directement stimuler la guanylate cyclase pour provoquer une augmentation du taux cellulaire de GMPC.
ü Le GMPC va activer une PKG (famille des sérine/thréonine phosphorylase) qui produira des effets cellulaires.
ü Le GMPC est rapidement dégradé en 5’GMP (métabolite inactif) par les phosphodiestérases (PDE).
ü Le NO peut également donner l’ion péroxynitrile qui produira des lésions cellulaires (effets cytotoxiques)
· Biosynthèse du NO et leur effet physiologique :
La synthèse endogène du monoxyde d’azote est assez complexe et fait intervenir de nombreux intermédiaires.
- Il est produit à partir d’un acide aminé particulier, l’arginine, en présence d’O2. La synthèse est catalysée par l’enzyme NO synthase (NOS)
- Au niveau périphérique comme au niveau central, le NO agit comme un neurotransmetteur respectivement dans la transmission NANC (non adrénergique non cholinergique) et dans la neuromodulation de la transmission glutamatergique.
- Le NO produit dans la cellule endothéliale est un facteur protecteur va provoquer plusieurs effets à la fois sur les plaquettes, les cellules musculaires lisses et l’endothélium : action anticoagulante, diminution du tonus vasculaire.